

Petite masse ovoïde
Fixée sous l'abdomen d’un crabe (Pilumnus hirtellus et Xantho hydrophilus principalement)
Tégument lisse orange à brun
Taille jusqu' à 11 x 7 x 4 mm
Sacculina gerbei Bonnier, 1887
Sacculina gerbei Giard in Bonnier, 1887
Atlantique Nord-Est, Méditerranée
Zones DORIS : ● Europe (côtes françaises), ○ [Méditerranée française], ○ [Atlantique Nord-Est, Manche et mer du Nord françaises]La distribution du parasite est celle de l'hôte soit l'Atlantique Nord-Est et la Méditerranée.
Cette espèce est assez répandue chez les crabes de la famille des Xanthidés et de familles voisines.
Sacculina gerbei est un crustacé endoparasite* de plusieurs espèces de crabes. Le biotope du parasite est celui de l'hôte, généralement en zone côtière peu profonde (moins de 15 m).
Sacculina gerbei est un crustacé endoparasite*; parasite* simple pour la femelle et hyperparasite* pour le mâle. Chez la femelle de S. gerbei, le corps, dépourvu de toute segmentation, est composé de deux parties lorsque le parasite est à son plein développement : une partie externe visible qui bourgeonne sous l'abdomen du crabe parasité, appelée externa* (de nature reproductrice), et une partie interne non visible, appelée interna* (de nature racinaire), parcourant la majeure partie du corps de l’hôte. Ces deux parties sont reliées par un court pédoncule* qui traverse la paroi abdominale du crabe. La partie externe se présente sous la forme d'une masse ovoïde à trapézoïdale. La partie avant de l’externa est plus large que la partie centrale. Sa couleur varie de l’orange au brun orangé. Sa taille ne dépasse guère les 10 millimètres, compte tenu de la taille des crabes parasités (jusqu'à 11 x 7 x 4 mm, diamètre dorso-ventral, le diamètre antéro-postérieur et l'épaisseur). Sa surface apparaît lisse mais une observation à la loupe binoculaire montre qu’elle est parcourue de nombreuses rides, ce qui donne à l’externa une fausse allure d’organe contracté. L’ouverture du manteau (enveloppe externe de l’externa), située à l’opposé du pédoncule, est bordée d’un bourrelet.
Le mâle est minuscule ; il parasite la femelle (hyperparasitisme). Il est extrêmement réduit, essentiellement constitué de tissu qui produit des gamètes mâles. Chez les Sacculinidés, une externa peut généralement héberger un ou deux mâles dans un ou deux réceptacles spécifiques. Ce système est souvent qualifié de cryptogonochorisme.
Selon WoRMS*, il y a 120 espèces dans le genre Sacculina au niveau mondial. En Europe, il existe plusieurs espèces de sacculines. L’espèce la plus commune, et de loin, est Sacculina carcini, qui parasite le crabe vert Carcinus maenas et plusieurs autres espèces de crabes (Brachynotus sexdentatus, Polybius spp., Polybius holsatus notamment). Très souvent, les espèces de sacculines sont inféodées à certaines espèces de crabe et l’association est si spécifique qu'il suffit, dans bien des cas, d'identifier le crabe parasité pour identifier son parasite, ce qui est plus ou moins le cas de Sacculina gerbei.
Voici quelques exemples d’association de sacculines (la plupart des hôtes sont en zone DORIS) :
Sacculina amplituba, sacculine de Ashtoret granulosa (Miers, 1877)
Sacculina atlantica, sacculine de Dorhynchus thomsoni
Sacculina bourdoni, sacculine de Xantho pilipes
Sacculina duracina, sacculine de Parthenope longimanus
Sacculina eriphiae, sacculine de Eriphia verrucosa
Sacculina gonoplaxae, sacculine de Goneplax rhomboides et plus rarement de Pilumnus spinifer
Sacculina granifera, sacculine de Portunus pelagicus Sacculina lobata, sacculine de Ebalia tuberosa
Sacculina inflata, sacculine de Hyas sp. et de Cancer pagurus
Outre le genre Sacculina, la famille des Sacculinidés comprend 5 autres genres. Le genre Drepanorchis comporte des espèces très proches. Drepanorchis neglecta, par exemple, parasite quasiment tous les Macropodia spp. ou les Inachus. spp. européens.
La sacculine puise les éléments nutritifs dont elle a besoin pour se développer directement à l'intérieur du crabe qu’elle parasite grâce à un réseau de canaux, les rhizoïdes*, qui lui permettent d'absorber sa nourriture.
C'est grâce au cycle de reproduction, et notamment grâce à l'étude des larves*, que l'on a pu à l'époque rapprocher ces organismes des crustacés. Les larves des sacculines sont en effet similaires aux larves des autres crustacés cirripèdes (stade nauplius* avec des « cornes » puis stade cypris*).
Les sacculines semblent être hermaphrodites*, produisant des gamètes* mâles et femelles, mais elles ne le sont pas en réalité. Seules les larves cypris femelles sont infestantes et se fixent initialement sur un hôte en cours de mue*.
La larve nauplius femelle, démunie de tube digestif comme la larve mâle (et donc lécitotrophe*), mène pendant quelques temps une vie pélagique*, avec uniquement 4 stades larvaires (contre 6 habituellement pour les cirripèdes classiques), et se transforme en larve cypris, caractéristique des crustacés cirripèdes. Cette larve cypris est également lécitotrophe, mais il s’agit là d’une caractéristique partagée par tous les cirripèdes. Elle vient se fixer par ses antennules* à la base d’une soie* sensorielle du futur crabe hôte, essentiellement Pilumnus hirtellus et Xantho hydrophilus pour ce qui concerne Sacculina gerbei, et se métamorphose* ensuite en larve kentrogone*, dotée d’un stylet creux. La kentrogone injecte en quelques secondes son contenu dans les tissus internes du crabe après que le stylet creux ait perforé la cuticule* de l’hôte (ce qui ne prend qu’une dizaine de minutes), selon des modalités qui restent encore inconnues. Ce contenu injecté est, dans les faits, un nouveau stade larvaire, avec sa cuticule, et prend le nom de vermigon, allusion à son aspect vermiforme*. Afin de faciliter cette pénétration, le crabe choisi doit être en période de mue. Une fois à l’intérieur des tissus de l’hôte, le vermigon, qui est initialement mobile, croît et développe alors un réseau de petits canaux qui envahissent progressivement l'intérieur du crabe. Ces ramifications s'enfoncent très profondément, et se ramifient jusqu'à l'extrémité de chaque patte. Puis l’externa* émerge à l'extérieur du crabe à l’occasion d’une mue.
Les larves cypris mâles sont des hyperparasites, et viennent se fixer sur l’externa, près de son ouverture, lorsque celui-ci n’a encore que quelques jours (jeune parasite femelle, donc). Une fois fixée, la cypris mâle se métamorphose en larve trichogone (ainsi appelée parce qu’elle est dotée de nombreux poils) puis pénètre très rapidement (en quelques secondes) dans la cavité palléale* de la femelle par l’ouverture de l’externa. Pour poursuivre son parcours, la larve trichogone perd sa cuticule* et va s’établir dans un canal dédié où elle se transforme en testicule (cryptogonochorisme). Le nombre de larves trichogones ainsi admises est limité à 2, correspondant au nombre de réceptacles disponibles chez la femelle.
L’externa constitue en fait une gonade* géante où ont lieu fécondation* et incubation* des œufs puis éclosion des larves nauplius, qui sont relarguées par l’ouverture de l’externa. A noter que l’externa qui n’aurait pas réussi à capter des cypris mâles ne se développe pas. Un seul mâle capturé suffit cependant à poursuivre le développement du parasite jusqu’à sa phase reproductrice.
Les œufs femelles sont plus petits que les œufs mâles. Il en va de même pour les larves. L’une des explications données à ce dimorphisme* serait lié aux besoins en énergie de ces larves lécitotrophes. D’un point de vue statistique, la larve femelle a beaucoup plus de facilité à trouver son hôte (un jeune crabe qui vient de muer) que la larve mâle (qui doit trouver un crabe parasité avec un externa récent). La durée de vie planctonique* sera donc statistiquement plus longue chez le mâle que chez la femelle, d’où la nécessité d’emporter des réserves nutritives plus conséquentes.
La sacculine mue* après chaque phase d’émission de larves. Cette mue est limitée aux parties internes. Ceci permet notamment de débarrasser la chambre d’incubation* des larves non écloses.
Compte tenu notamment de sa faible abondance, le cycle de vie de Sacculina gerbei n’est pas connu avec précision, contrairement à celui de Sacculina carcini.. Il est cependant très probable, pour des raisons physiologiques, que la larve femelle se fixe sur son hôte en été ou à l’automne. Le parasite se développe alors en interne de son hôte durant l’hiver et l’externa émerge au printemps, à l’époque où les cypris mâles peuvent être rencontrés pour se fixer sur l’externa vierge. Une fois féconde, quelques mois plus tard, la sacculine peut se reproduire.
Sacculina gerbei parasite* plusieurs espèces de crabes, en particulier Pilumnus hirtellus et Xantho hydrophilus. Mais l’espèce peut parasiter de nombreuses autres espèces (Ethusa mascarone, Xantho granulicarpus, Pilumnus spinifer, Atelecyclus rotundatus).
Un aspect particulièrement intéressant est l'existence d'un hyperparasite chez cette sacculine. Des S. gerbei ont été observées parasitées à leur tour par un isopode épicaride du genre Danalia. À Banyuls, S. gerbei sur Pilumnus spinifer a ainsi été photographiée avec un Danalia inopinata associé à l'externa*.
D'une façon générale, les crabes parasités par des sacculines connaissent de profondes modifications morphologiques. Les organes sexuels s’atrophient. Chez les mâles, les caractères sexuels secondaires s’estompent et l’abdomen s’élargit pour ressembler à celui de la femelle (sans doute pour mieux protéger le parasite). Chez les femelles, les quatre paires de pattes ovigères*, destinées à soutenir la masse d’œufs, se réduisent.
Les crabes parasités voient la périodicité de leur mue* ralentir tant que l’externa n’a pas émergé. Ensuite, les crabes parasités ne muent plus du tout et leur carapace se couvre donc fréquemment d’animaux sessiles* (balanes, vers tubicoles, etc.).
Cette action est partiellement réversible, en fonction de l’état des dégradations des organes sexuels de l’hôte, le crabe pouvant retrouver tout ou partie de ses caractères sexuels si la sacculine meurt et que la zone germinative testiculaire n’a pas été totalement détruite par le parasite.
Les mécanismes par lesquels le parasite parvient ainsi à bloquer la mue de son hôte restent encore à approfondir, même si l’on sait aujourd’hui qu’ils passent notamment par des médiateurs chimiques (hormones, neuromédiateurs, etc.). Il s’agit d’un domaine dans lequel les chercheurs ont fait d’énormes progrès ces dernières années mais où presque tout reste encore à découvrir.
Les crabes parasités se comportent comme s’ils étaient porteurs d’œufs et, par conséquent, ne chercheront jamais à détruire l’externa. De manière intéressante, ce comportement de protection des œufs s’étend apparemment aux mâles parasités. Au moment de la libération des larves* de la sacculine, le crabe va battre de l'abdomen, comme il le fait lors de sa propre ponte pour aider à la dispersion des larves. Ce comportement favorise alors la dispersion des larves du parasite. Il est lié à une prise de contrôle très avancée du parasite sur le système nerveux central de l’hôte. Lors de la phase initiale d’endoparasitisme, la chaîne ganglionnaire ventrale de l’hôte constitue l’une des toutes premières cibles des rhizoïdes*.
Le sac externe de la sacculine se forme sous l’abdomen du crabe, qui le protège ainsi partiellement, et l'empêche de se replier complètement.
Contrairement à Sacculina carcini, qui peut parfois parasiter plus de 50% d’une population de Carcinus maenas ou Carcinus aestuari, Sacculina gerbei a un taux de pénétration qui reste faible (moins de 1% d’une population, quelle que soit l’espèce parasitée).
On peut trouver plusieurs individus sur un même crabe (ce qui est également possible chez les autres sacculines, mais semble plus fréquent que chez Sacculina carcini).L’espèce a été « décrite » pour la première fois en 1887 par Jules Bonnier (1859-1908) sous le nom Sacculina gerbei Giard. Or, aucune publication de Alfred Giard (1846-1908) ne fait référence à cette espèce. La description de Bonnier, qui n’était qu’une simple citation de l’espèce, a donc été considérée comme Nomen nudum (littéralement « nom nu ») en application du code international de nomenclature zoologique, et donc invalidée.
La première description valide de l’espèce a été effectuée par Joseph Guérin-Ganivet en 1911.
Le doute a très longtemps subsisté quant à la validité de cette espèce, beaucoup d’auteurs (dont Joseph Guérin-Ganivet) considérant qu’il pouvait s’agir d’une forme particulière de Sacculina carcini. Il a fallu attendre les travaux de Hildebrand Boschma, en 1955, pour que soit établie avec certitude la validité de cette espèce, sur la base d’une observation microscopique de l’externa*, et des organes reproducteurs mâles.
L'infra-classe des rhizocéphales est aujourd’hui considéré comme monophylétique*. Par contre, l’ancien ordre des Kentrogonides, qui regroupe toutes les espèces produisant une larve kentrogone comme les sacculines, est considéré comme polyphylétique*, donc invalide, depuis les travaux publiés en 2020 par Jens T. Høeg & al.
Sacculine des pilumnes et des xanthes : le nom sacculine est une francisation du nom scientifique. Le nom français retenu fait référence aux crabes les plus classiquement parasités par cette espèce.
Sacculina : ce nom provient du latin [sacculus] = petit sac. Il a été créé en 1836 par John Vaughan Thompson (1779-1847), un médecin militaire britannique qui a publié de nombreux ouvrages en biologie marine, en zoologie et en botanique.
gerbei : le nom d'espèce gerbei a été attribué en hommage au professeur Jean-Joseph Zéphirin Gerbe, naturaliste français (1810-1890), principalement connu pour ses travaux ornithologiques.
Numéro d'entrée WoRMS : 850508
| Termes scientifiques | Termes en français | Descriptif | |
|---|---|---|---|
| Embranchement | Arthropoda | Arthropodes | Animaux invertébrés au corps segmenté, articulé, pourvu d’appendices articulés, et couvert d’une cuticule rigide constituant leur exosquelette. |
| Sous-embranchement | Crustacea | Crustacés | Arthropodes à exosquelette chitineux, souvent imprégné de carbonate de calcium, ayant deux paires d'antennes. |
| Super classe | Multicrustacea | ||
| Classe | Thecostraca | Thécostraces | |
| Sous-classe | Cirripedia | Cirripèdes | |
| Famille | Sacculinidae | Sacculinidés | |
| Genre | Sacculina | ||
| Espèce | gerbei |
 Crustacés Cirripèdes (balanes, anatifes...)
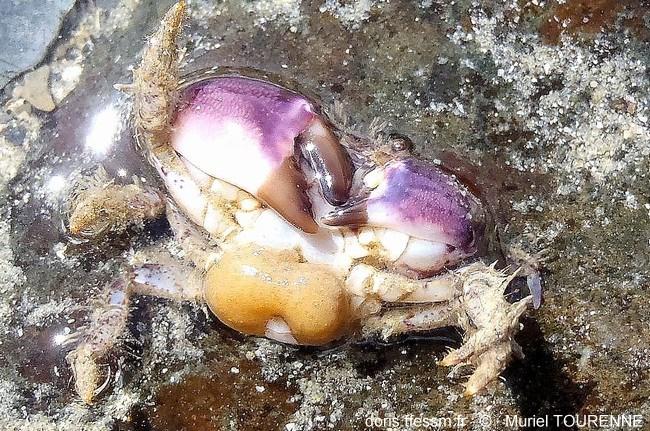
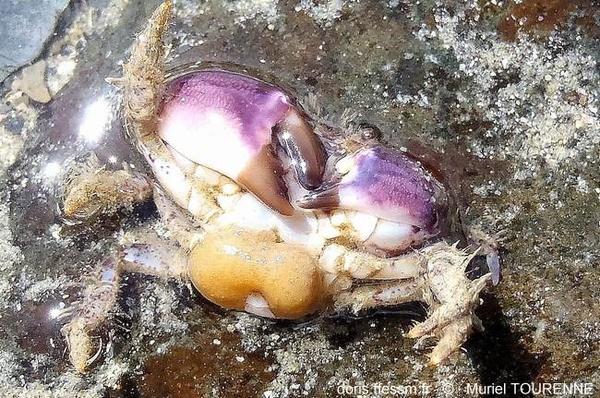
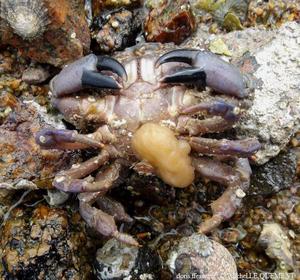
Sous un pilumne Pilumnus hirtellus
Sous un bel individu de couleur mauve, la masse orangée du parasite. L’ouverture du manteau, bordée d’un bourrelet, est ici visible, du côté opposé au telson*.
En partie basse de l'estran, Agon-Coutainville (50), océan Atlantique.,
06/06/2012
Crustacés Cirripèdes (balanes, anatifes...)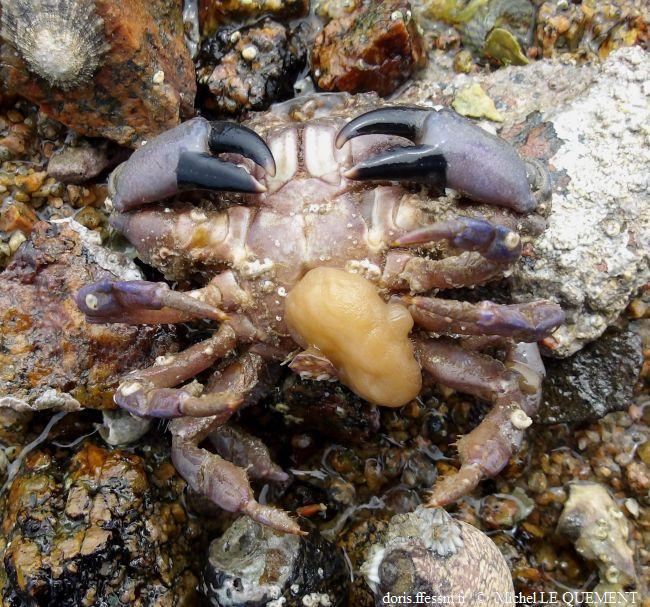
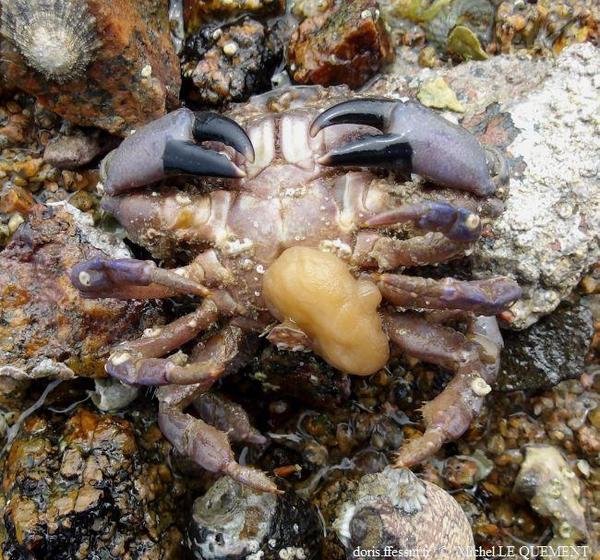
Sous un xanthe Xantho hydrophilus
Ce spécimen de Xantho hydrophilus mâle est parasité par Sacculina gerbei.
Sur l'estran, grève de Pen Lan, Pleubian (22), Manche
22/05/2024
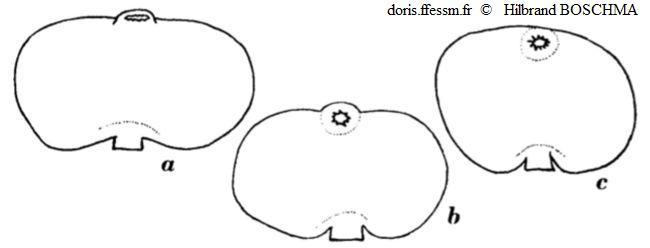
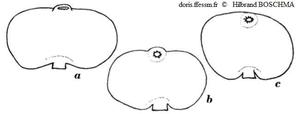
Aspect de trois individus (dessin)
En règle générale, les parasites présentent une forme ovoïde ; chez la plupart des spécimens, la zone correspondant à l’ouverture du manteau fait saillie à la surface de ce dernier sous la forme d’un court tube.
Dessin de Hilbrand Boschma, in The described species of the family Sacculinidae, Saint-Jean-de-Luz (64), océan Atlantique.
Reproduction de documents anciens
1955
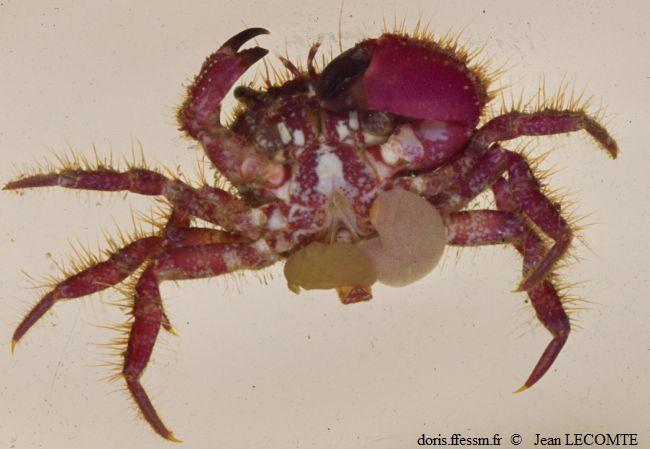
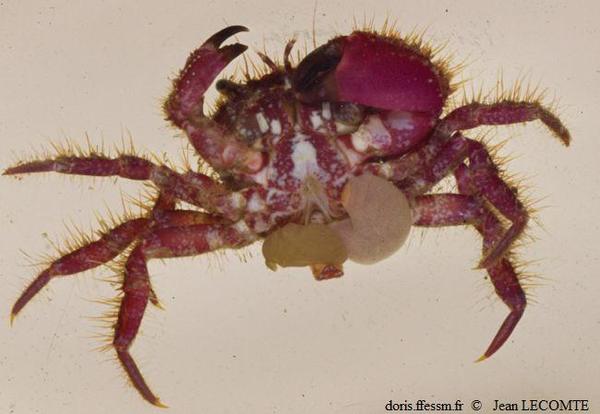
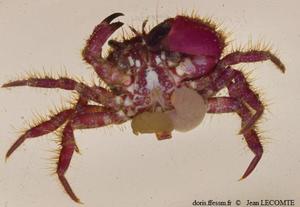
Pilumnus spinifer parasité par une Sacculina gerbei, elle-même parasitée par Danalia inopinata
Vue ventrale d'un Pilumnus spinifer. L'abdomen étroit et les stylets copulateurs montrent qu'il s'agit clairement d'un mâle. La sacculine (de couleur beige à gauche) est parasitée par l'isopode hyperparasite (de couleur rosée à droite). La sacculine est sensée féminiser le crabe hôte mais ici elle est elle-même parasitée ; l'hyperparasite l'a peut-être "gênée" dans son action castratrice sur le crabe mâle.
Banyuls-sur-mer (66), mer Méditerranée, 4 m
10/10/1974
Rédacteur principal : Christophe QUINTIN
Vérificateur : Pierre NOËL
Responsable régional : Yves MÜLLER
Bocquet-Védrine J., 1972, Les Rhizocéphales, Cahiers de Biologie Marine, 13, 615-626.
Bonnier J., 1887, Catalogue des crustacés malacostracés recueillis dans la baie de Concarneau, Bulletin Scientifique du Département du Nord et des Pays Voisins, 18, 199-262.
Boschma H., 1955, The rhizocephalan parasite of the crab Xantho incisus (Leach), Zoologische Mededelingen, 23, 227-235.
Boschma H. 1955, The described species of the family Sacculinidae, Zoologische Verhandelingen, 27, 1–76.
Bourdon R., 1960, Rhizocéphales et Isopodes parasites des décapodes marcheurs de la baie de Quiberon, Bulletin de la Société des Sciences de Nancy, 19, 134-153.
Bourdon R., 1963, Epicarides et Rhizocéphales de Roscoff, Cahiers de Biologie Marine, 4, 415-434.
Giard A., 1887, La castration parasitaire et son influence sur les caractères extérieurs du sexe mâle chez les crustacés décapodes, Bulletin scientifique du département du Nord, 18, 1-28.
Glenner H., Hebsgaard M.B., 2006, Phylogeny and evolution of life history strategies of the Parasitic Barnacles (Crustacea, Cirripedia, Rhizocephala), Molecular Phylogenetics and Evolution, 41, 528–538.
Glenner H., Høeg J., O’Brien J., Sherman T., 2000, Invasive vermigon stage in the parasitic barnacles Loxothylacus texanus and L. panopaei (Sacculinidae): closing of the rhizocephalan life-cycle, Marine Biology, 136, 249-257.
Guérin-Ganivet J., 1911, Contribution à l'étude systématique et biologique des rhizocéphales, Travaux Scientifique du Laboratoire de Zoologie et de Physiologie Maritimes de Concarneau, 3, 1-97, pl. 1.
Høeg J., 1995, The biology and life cycle of Rhizocephala (Cirripedia), Journal of Marine Biological Association of UK, 75, 517-550.
Høeg J., Jørgen L., 1995, Life cycle and reproduction in the Cirripedia Rhizocephala, Oceanography and Marine Biology: an Annual Review, 33, 427-485.
Høeg J., Noever C., Rees D., Crandall K., Glenner H., 2020, A new molecular phylogeny-based taxonomy of parasitic barnacles (Crustacea: Cirripedia: Rhizocephala), Zoological Journal of the Linnean Society, 190, 632–653.
Ljubimka I., 2007, Cirripedia of Adriatic, Studia Marina, 24(2), 1–167.
Thompson J. V., 1836, Natural history and metamorphosis of an anomalous crustaceous parasite of Carcinus maenas, the Sacculina carcini, The Entomological Magazine, 3, 452-456.
Les textes et images sont sous licence et ne sont pas libres de droit.
Pour les ayants-droits, connectez-vous.
Pour toute demande d'utilisation (exemple d'un formateur Bio de la FFESSM...) contactez nous ici.