

Algue unicellulaire visible au microscope optique
Epibionte sur un copépode comme Euterpina acutifrons
Présence d’un pédoncule
Frustule en forme de sarcophage égyptien
Cosmopolite
Zones DORIS : ● Europe (côtes françaises)L’espèce est rencontrée dans les eaux tempérées du monde (au Japon, au Mexique, en Argentine, en Méditerranée, en Atlantique et désormais en Manche).
Jusqu'à aujourd'hui cette diatomée* a été observée exclusivement en épibiose* sur le copépode* harpacticoïde Euterpina acutifrons (Dana, 1848).
Sceptronema orientale présente une forme très caractéristique en vue valvaire*, rappelant un sarcophage égyptien. En vue cingulaire, le frustule* présente une forme quadrangulaire, légèrement en coin. La séparation entre les deux valves* est très nette. Cette diatomée* est fixée sur la cuticule* du copépode* par un pédoncule* mucilagineux*. Les cellules peuvent parfois s’assembler tête-bêche (par le côté « tête » du sarcophage ou par le côté « pied ») pour former une courte chaîne. Dans sa description initiale, Hideaki Takano indiquait que ces chaînes pouvaient comporter plus de 2 individus, mais cette configuration ne semble pas courante dans nos eaux.
Au microscope optique, il est possible d’observer 2 petits septums* en vue cingulaire, limités à la zone apicale* côté « tête ».
Il arrive que le pédoncule d’un individu se fixe sur le pédoncule d’un autre individu, ce qui donne l’impression d’un pédoncule se ramifiant, ce qui n’est pas le cas. Selon certains auteurs, ce mode de fixation particulier pourrait correspondre à une adaptation de l’espèce à son mode de vie épizoïque*.
La longueur du frustule varie entre 30 et 60 microns. La largeur varie entre 7 et 10 microns.
Sceptronema orientale est une algue autotrophe*, se nourrissant grâce à la photosynthèse*.
La multiplication des diatomées* est principalement assurée par division cellulaire, selon un mode très original : lors d’une mitose*, les deux valves* du frustule de la cellule mère se séparent, chacune devenant l’épithèque* d’une cellule fille. Chaque cellule fille régénère alors la valve manquante, l’hypothèque*. Ainsi, à chaque division mitotique d’une cellule, la cellule fille qui a hérité de l’épithèque* est de taille identique, et la cellule fille qui a hérité de l’hypothèque* est plus petite, ce qui entraîne une diminution progressive avec le temps de la taille moyenne d’une population.
Il existe une taille minimale au-delà de laquelle s’engage une reproduction sexuée. Cette taille minimale varie selon les espèces.
Pour la reproduction sexuée, les gamètes* mâles et femelles (généralement produits par deux cellules différentes) sont générés par méïose*. Chez les diatomées pennées*, comme Sceptronema orientale, les gamètes mâles sont dépourvus de flagelle* et la reproduction sexuée nécessite donc un rapprochement étroit entre individus compatibles. Le transfert de gamètes s’effectue grâce à des mouvements amiboïdes et des formations mucilagineuses*. La fusion des gamètes mâles et femelles donne naissance à un œuf, qui se transformera en auxospore*. L’auxospore s’entoure généralement d’un abondant mucilage* puis grossit jusqu’à atteindre la taille spécifique maximale d’une diatomée, avant de sécréter son frustule* siliceux.
Chez certaines espèces, des auxospores modifiées peuvent également être utilisées par les diatomées pour engager une phase de dormance ou de résistance, lorsque les conditions ambiantes deviennent défavorables.
A ce jour, les quelques observations de cette diatomée* font état d'une vie en épibiose* sur le copépode* harpacticoïde Euterpina acutifrons Dana,1848. Elle n’est pas connue sous forme libre, ni associée à d'autres espèces de copépodes*.
On peut évidemment s’interroger sur l’impact de la diatomée vis-à-vis du copépode hôte. Les diatomées induisent de manière évidente des restrictions dans les capacités motrices du copépode compte tenu de l’augmentation importante de la traînée.
Des observations en laboratoire, sur une autre association (le copépode Acartia tonsa et la diatomée Tabularia sp., espèce épibionte* bien connue), conduites par Yen-Ju Pan et al. (2021), ont effectivement montré que les individus hôtes avaient tendance à couler au fond du bac expérimental. Par ailleurs, les femelles concernées produisent moins d’œufs que les femelles sans diatomées. L’origine précise de cet impact n’est pas connue, mais il faut rappeler que les métabolites des diatomées sont connus pour influer négativement sur la reproduction des copépodes (il s’agit sans doute d’une stratégie de défense des diatomées vis-à-vis de leur prédateur principal).
Alf Skovgaard et Enric Saiz ont, pour leur part, constaté que 30 % des femelles ovigères* de Euterpina acutifrons étaient infestées par la diatomée. Ces auteurs n’ont pas réalisé d’analyse quant au nombre d’œufs portés par les femelles concernées.
La taxonomie de Sceptronema orientale fait aujourd’hui l’objet de débats. Plusieurs auteurs (voir notamment Eugenia A. Sar & Inés Sunesen) rattachent cette espèce à la famille des Licmophoraceae, qui comporte de nombreuses espèces munies d’un pédoncule*. Ceci ne fait pas encore consensus et l’espèce est donc classée aujourd’hui parmi les incertae sedis (soit position incertaine dans la classification).
Les observations réalisées par Alf Skovgaard et Enric Saiz en Méditerranée occidentale ont montré qu’il pouvait être observé jusqu’à 68 % de copépodes* infestés par Sceptronema orientale, avec une moyenne de 34 % sur la période d’août à décembre 2003. La diatomée n’était pas visible au printemps et n’apparaissait pas avant la mi-juillet. Les juvéniles sont moins colonisés, probablement en raison de la fréquence de leurs mues* de croissance. Cette absence d’individus visibles sur la première partie de l’année amène évidemment à s’interroger sur le cycle de vie de l’espèce (autre hôte, existence de formes libres ou de résistance ?).
Cette
diatomée n’a été découverte que récemment, sa description initiale par Hideaki
Takano datant de 1983. Elle a ensuite été observée en Méditerranée orientale en
1992 (Baruch Kimor & al.). Fernando Gómez & al. ont indiqué que cette
espèce avait été observée pour la première fois en rade de Brest et dans
plusieurs endroits au large en Manche, en 2018. Compte tenu de la forte
pression d’observation du plancton marin en Manche, et de l’abondance du
copépode* Euterpina acutifrons, on peut donc supposer que cette diatomée,
qui présente plutôt des affinités pour les eaux chaudes, est apparue récemment
dans la Manche. On peut y voir un effet du réchauffement des eaux marines.
Sceptronème orientale : la proposition de nom français est une traduction littérale du nom scientifique.
Sceptronema : Hideaki Takano n’a pas formellement explicité l’origine du nom Sceptronema lorsqu’il a proposé ce nouveau genre. Il indique cependant dans sa publication que l’espèce ressemble à Sceptroneis caducea Ehrenberg (Hustedt, 1931) (espèce aujourd’hui affectée au genre Rhaphoneis). On peut donc supposer qu’il a cherché à conserver un nom proche de Sceptroneis en remplaçant le suffixe [-neis] = bateau en grec ancien par le suffixe [-nema] = fil en grec ancien, pour illustrer la présence d’un pédoncule*. Le préfixe Sceptro- provient du grec ancien [Sceptron] = bâton de commandement, qui a donné sceptre en français, par allusion à la forme générale des espèces de ces deux genres (une masse à l’extrémité d’un pédoncule ou d’une partie plus grêle).
orientale : le nom d’espèce orientale a certainement été retenu pour rappeler l’origine des premiers individus identifiés, provenant des eaux côtières japonaises (devant la ville de Shimoda, préfecture de Shizuoka).
Numéro d'entrée WoRMS : 622478
| Termes scientifiques | Termes en français | Descriptif | |
|---|---|---|---|
| Embranchement | Heterokontophyta | Hétérokontophytes | |
| Sous-embranchement | Bacillariophytina | ||
| Classe | Bacillariophyceae | Bacillariophycées | |
| Sous-classe | Bacillariophyceae incertae sedis | ||
| Genre | Sceptronema | ||
| Espèce | orientale |
 Diatomées et autre phytoplancton
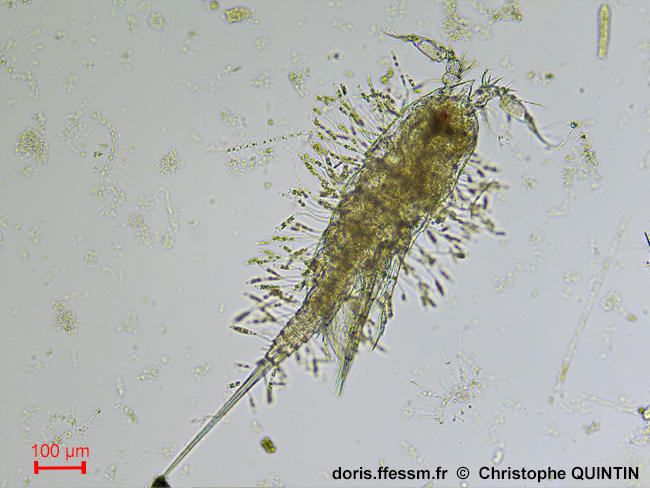
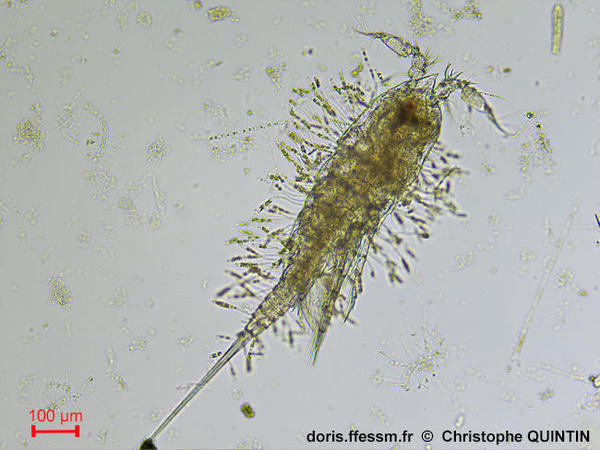
Vue dorsale du copépode Euterpina acutifrons, avec de nombreuses diatomées Sceptronema orientale en épibionte
Les pédoncules* de la diatomée* sont plus courts sur les individus placés à l'avant du copépode*.
Observation au laboratoire au microscope avec un objectif x10
Prélèvement en surface au filet à plancton maille 35 microns
Les Noirs, Saint-Quay-Portrieux (22),
06/08/2025
Diatomées et autre phytoplancton

Vue détaillée de l'avant droit
Cette microphotographie permet d'observer la diatomée* en vue valvaire* (forme en quille, ou en sarcophage égyptien) et en vue cingulaire (forme en coin).
Observation au laboratoire au microscope avec un objectif x40
Prélèvement en surface au filet à plancton maille 35 microns
Les Noirs, Saint-Quay-Portrieux (22),
06/08/2025


Vue détaillée de l'avant gauche
Cette microphotographie permet de voir une particularité de cette espèce, avec des cellules se développant parfois sur une autre cellule, formant ainsi une courte chaîne (flèche). On peut voir sous la flèche un individu en vue cingulaire.
A noter que, comme sur les photos précédentes, les cellules présentent des chloroplastes désorganisés et sont vraisemblablement moribondes.
Observation au laboratoire au microscope avec un objectif x40
Prélèvement en surface au filet à plancton maille 35 microns
Les Noirs, Saint-Quay-Portrieux (22),
06/08/2025


Vue détaillée du pédoncule caudal
Les cellules ont des pédoncules* de longueur variable, mais relativement longs. On peut observer des individus en vue cingulaire et en vue valvaire*.
Observation au laboratoire au microscope avec un objectif x40
Prélèvement en surface au filet à plancton maille 35 microns
Les Noirs, Saint-Quay-Portrieux (22
06/08/2025
Rédacteur principal : Christophe QUINTIN
Vérificateur : Jean-Luc MOUGET
Responsable régional : Yves MÜLLER
Gómez F., Courcot L., Artigas L.F., 2020, Observations of the diatoms Sceptronema orientale Takano and Tabularia parva (Kützing) D.M.Williams & Round on the exoskeleton of copepods in the English Channel an coastal Celtic Seas, Cryptogamie, Algologie, 41(4), 25-30.
Hernández-Becerril D., 2022, Morphology of three marine epizoic diatoms from the Mexican Pacific: Protoraphis hustedtiana, Pseudohimantidium pacificum and Sceptronema orientale, Intropica, 16(2), 260-266.
Kimor B., Gordon N., Neori A., 1992, Symbiotic associations among the microplankton in oligotrophic marine environments, with special reference to the Gulf of Aqaba, Red Sea, Journal of Plankton Research, 14,1217-1231.
Maria de Souza-Mozimann R., Moro Roos-Oliveira A., 1998, Diatomáceas (Bacillariophyceae) planctônicas do Ribeirão da Fazenda – Manguezaldorio Tavares, Florianópolis – SC – Brasil, Insula, 27, 59-98.
Pan Y.-J., Wang W.-L., Hwang J.-S., Souissi S., 2021, Effects of Epibiotic Diatoms on the Productivity of the Calanoid Copepod Acartia tonsa (Dana) in Intensive Aquaculture Systems, Frontiers in Marine Science, 8. 10.3389/fmars.2021.728779.
Sar E.A., Sunesen I., 2014, The epizoic marine diatom Sceptronema orientale (Licmophoraceae, Licmophorales); epitypification and emendation of specific and generic description, Phytotaxa, 177, 269-279.
Skovgaard A., Saiz E., 2006, Seasonal occurrence and role of protistan parasites in coastal marine zooplankton, Marine Ecology Progress Series, 327, 37-49.
Takano H., 1983, New and rare Diatoms from Japanese marine waters. XI. Three new species epizoic on copepods, Bulletin Tokai Regional Fisheries Research Lab, 111, 23-37, 2 pls.
La page sur Sceptronema orientale sur le site de référence de DORIS pour les algues : AlgaeBase
Les textes et images sont sous licence et ne sont pas libres de droit.
Pour les ayants-droits, connectez-vous.
Pour toute demande d'utilisation (exemple d'un formateur Bio de la FFESSM...) contactez nous ici.


